Nội dung
Chuyên môn,Dinh dưỡng
Vitamin trong dinh dưỡng thú cưng

Nguyễn Duyên
Nội dung được cung cấp bởi các bác sĩ chuyên khoa- Là các phân tử hữu cơ cần thiết với lượng cực nhỏ, đóng vai trò là enzyme, tiền chất hoặc coenzyme cho các quá trình chuyển hóa.
- Vitamin không cung cấp năng lượng.
- Được chia thành hai nhóm chính: vitamin tan trong chất béo (A, D, E, K) và vitamin tan trong nước (vitamin C và nhóm B). Hai nhóm này khác nhau về cơ chế hấp thu, dự trữ, chuyển hóa, đào thải cũng như nguy cơ thiếu hụt và ngộ độc.
- Vitamin tan trong chất béo được hấp thu cùng lipid, đào thải chủ yếu qua mật và phân, đồng thời có thể tích lũy ở gan. Nhờ khả năng dự trữ, tình trạng thiếu hụt thường xuất hiện chậm; tuy nhiên, việc tích lũy cũng làm tăng nguy cơ ngộ độc, đặc biệt đối với vitamin A và D.
- Vitamin tan trong nước chủ yếu được hấp thu ở ruột non và đào thải qua nước tiểu. Ngoại trừ vitamin B12 (cobalamin), cơ thể hầu như không dự trữ được nhóm vitamin này, khiến nguy cơ ngộ độc thấp nhưng thiếu hụt có thể xảy ra nhanh nếu khẩu phần không đáp ứng đủ nhu cầu.
Nhóm vitamin tan trong chất béo được tiêu hóa và hấp thụ bằng các cơ chế tương tự như chất béo trong chế độ ăn, và các chất chuyển hóa của chúng được bài tiết chủ yếu qua phân thông qua mật.
Nhóm vitamin tan trong nước được hấp thụ thụ động ở ruột non và được bài tiết qua nước tiểu
Vitamin A
- Vitamin A bao gồm retinol, retinal và retinoic acid, trong đó retinol là dạng có hoạt tính sinh học cao nhất. Vitamin A đóng vai trò thiết yếu trong thị giác, duy trì biểu mô, phát triển xương và chức năng sinh sản.
- Trong thị giác, retinal kết hợp với opsin tạo thành rhodopsin giúp mắt thích nghi với thay đổi cường độ ánh sáng. Thiếu vitamin A làm giảm tái tạo rhodopsin, dẫn đến quáng gà.
- Vitamin A duy trì tính toàn vẹn của da và niêm mạc, thúc đẩy biệt hóa tế bào biểu mô và sản xuất chất nhầy, qua đó tăng cường hàng rào bảo vệ và giảm nguy cơ nhiễm trùng.
- Nguồn gốc từ carotenoid, đặc biệt là β-carotene, được chuyển hóa thành vitamin A ở ruột và dự trữ chủ yếu tại gan. Nguồn vitamin A hoạt động có nhiều trong gan, dầu gan cá, sữa và lòng đỏ trứng.
- Chó có thể chuyển β-carotene thành vitamin A, trong khi mèo không có hoặc thiếu enzyme β-carotene 15,15′-dioxygenase, nên phải được cung cấp vitamin A dạng tiền tạo thành từ nguồn động vật.
- Ngoài vai trò là tiền chất vitamin A, β-carotene và lutein còn góp phần điều hòa đáp ứng miễn dịch ở cả chó và mèo, và nhiều nghiên cứu cho thấy chúng góp phần tăng cường miễn dịch qua trung gian tế bào và miễn dịch dịch thể.
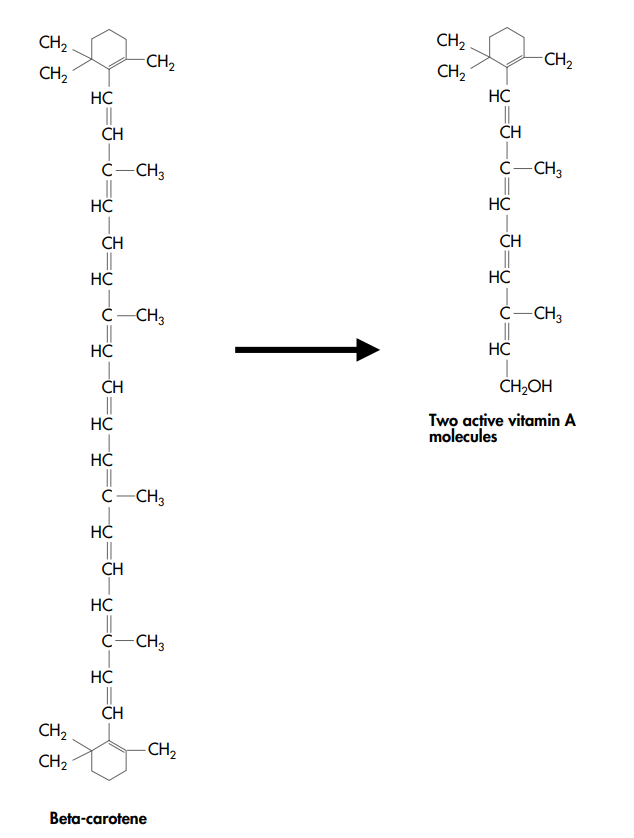
Hình 1. Chuyển hóa beta-carotene thành vitamin A (Case và cs., 2011)
Vitamin D
- Là nhóm hợp chất sterol gồm vitamin D₂ (ergocalciferol) và vitamin D₃ (cholecalciferol), có vai trò trung tâm trong điều hòa chuyển hóa canxi và phospho, từ đó duy trì sức khỏe xương.
- Cholecalciferol là dạng không hoạt động, được dự trữ ở gan, cơ và mô mỡ, sau đó được chuyển hóa tại gan thành 25-hydroxycholecalciferol và tiếp tục tại thận thành calcitriol (1,25-dihydroxycholecalciferol), là dạng hoạt động sinh học mạnh nhất. Quá trình này được điều hòa bởi hormone cận giáp (PTH) và nồng độ canxi, phospho trong máu.
- Calcitriol làm tăng hấp thu canxi và phospho ở ruột, phối hợp với PTH để điều hòa huy động khoáng từ xương và tái hấp thu phospho tại thận, từ đó duy trì khoáng hóa, phát triển và tái cấu trúc xương bình thường.
- Thiếu vitamin D gây giảm khoáng hóa xương, dẫn đến còi xương (rickets) ở động vật non và loãng xương (osteomalacia) ở thú trưởng thành. Nguồn vitamin D tự nhiên chủ yếu là dầu gan cá, gan, lòng đỏ trứng và một số loại cá, trong khi hầu hết thức ăn thương mại cho chó mèo đều được bổ sung vitamin D₃.
Khả năng tổng hợp vitamin D từ ánh sáng mặt trời rất hạn chế, hai loài này phụ thuộc chủ yếu vào nguồn vitamin D từ khẩu phần ăn.
Vitamin E
- Là nhóm hợp chất gồm tocopherol và tocotrienol. Dạng α-tocopherol có hoạt tính sinh học cao nhất và được sử dụng phổ biến trong thức ăn thú cưng.
- Trong cơ thể, vitamin E được tìm thấy với lượng nhỏ ở hầu hết các mô và được tích hợp vào lớp màng kép của tế bào. Gan có khả năng dự trữ một lượng vitamin E đáng kể.
- Chức năng chính của vitamin E là chất chống oxy hóa, bảo vệ acid béo không bão hòa đa (PUFAs), màng tế bào, vitamin A và các acid amin chứa lưu huỳnh khỏi tổn thương do gốc tự do.
- Nhu cầu vitamin E tăng khi khẩu phần chứa nhiều PUFAs, vì lượng chất béo không bão hòa càng cao thì nguy cơ oxy hóa lipid càng lớn. Vitamin E và selen có tác dụng hiệp đồng: vitamin E ngăn hình thành peroxide, còn selen là đồng yếu tố của glutathione peroxidase giúp loại bỏ peroxide, từ đó làm giảm nhu cầu của nhau.
- Nguồn vitamin E chủ yếu có trong mầm lúa mì và các dầu thực vật (ngô, đậu nành, hạt hướng dương, hạt bông). Nguồn từ động vật thường thấp, ngoại trừ lòng đỏ trứng có thể chứa lượng vừa phải.
Vitamin E dễ bị phân hủy trong quá trình oxy hóa chất béo, vì vậy bảo quản thức ăn đúng cách là yếu tố quan trọng để duy trì hàm lượng vitamin E.
Vitamin K
- Vitamin K là nhóm hợp chất quinone gồm vitamin K₁ (phylloquinone) từ thực vật, vitamin K₂ (menaquinone) do vi khuẩn đường ruột tổng hợp và vitamin K₃ (menadione) là dạng tổng hợp có hoạt tính cao hơn K₁.
- Chức năng chính của vitamin K là tham gia quá trình đông máu, thông qua việc hoạt hóa các yếu tố đông máu II (prothrombin), VII, IX và X. Ngoài ra, vitamin K còn tham gia hoạt hóa một số protein liên quan đến xương và thận.
- Ở chó và mèo, một phần hoặc toàn bộ nhu cầu vitamin K có thể được đáp ứng nhờ vi khuẩn đường ruột. Do đó, thiếu vitamin K thường chỉ xảy ra khi hệ vi sinh bị suy giảm (ví dụ do dùng kháng sinh kéo dài) hoặc khi khả năng hấp thu vitamin K bị ảnh hưởng.
- Vitamin K có nhiều trong rau, trong khi nguồn động vật như gan, trứng và một số loại bột cá chỉ chứa lượng vừa phải. Trong thú y, vitamin K thường được sử dụng để điều trị ngộ độc thuốc diệt chuột có cơ chế chống đông máu.
Vitamin nhóm B
-
Đặc điểm chung: Vitamin nhóm B là các vitamin tan trong nước, có cùng nguồn thực phẩm và chức năng chuyển hóa tương tự nhau.
-
Vai trò của 9 loại vitamin B: Hoạt động như các coenzyme (phân tử hữu cơ nhỏ cần thiết cho enzyme) giúp kích hoạt các phản ứng tế bào cụ thể nhằm chuyển hóa năng lượng và tổng hợp mô.
-
Nhóm chuyển hóa năng lượng: Thiamin, riboflavin, niacin, pyridoxine, axit pantothenic và biotin giúp cơ thể sử dụng năng lượng từ thức ăn.
-
Nhóm phát triển tế bào và máu: Axit folic, cobalamin và choline chịu trách nhiệm duy trì, phát triển tế bào và/hoặc tổng hợp tế bào máu.
Thiamin (B1)
- Là thành phần của coenzyme thiamin pyrophosphate đóng vai trò quan trọng trong quá trình chuyển hóa carbohydrate.
-
Cần thiết cho các phản ứng hóa học giúp biến đổi carbohydrate thành năng lượng và chất béo, đồng thời tham gia chuyển hóa axit béo, axit nucleic, steroid và một số axit amin.
-
Tác hại khi thiếu hụt: Gây ảnh hưởng nghiêm trọng đến hệ thần kinh trung ương (CNS), vì hệ thần kinh này phụ thuộc hoàn toàn vào nguồn năng lượng ổn định từ carbohydrate.
-
Thiamin rất kém bền với nhiệt (dễ bị phá hủy bởi nhiệt độ cao khi chế biến thức ăn thú cưng). Do đó, các công ty thường phải bổ sung thêm lượng vitamin này trước khi chế biến để đảm bảo hàm lượng trong thành phẩm.
-
Tình trạng thiếu thiamin tự nhiên rất hiếm gặp ở chó mèo. Nếu xảy ra, nguyên nhân thường do chế độ ăn chứa các yếu tố kháng thiamin (antithiamin factors) chứ không phải do bản chất thức ăn thiếu vitamin này.
Lượng carbohydrate trong thức ăn càng cao thì nhu cầu thiamin của động vật càng lớn.
Riboflavin (B2)
- Được đặt tên theo màu vàng (flavin) và cấu trúc chứa đường đơn D-ribose. Vitamin này khá bền với nhiệt khi chế biến nhưng lại rất dễ bị phá hủy bởi ánh sáng và tia bức xạ.
- Cần thiết cho hệ thống enzyme oxy hóa giúp giải phóng năng lượng từ carbohydrate, chất béo, protein, cũng như tham gia vào nhiều con đường sinh tổng hợp của cơ thể.
- Hiện vẫn chưa rõ lượng riboflavin do vi khuẩn đường ruột tự tổng hợp đóng góp bao nhiêu phần trăm vào nhu cầu dinh dưỡng hàng ngày của chó và mèo.
Niacin (B3)
- Niacin (vitamin B₃) sau khi hấp thu được chuyển thành nicotinamide, tiền chất của hai coenzyme NAD và NADP, đóng vai trò thiết yếu trong các phản ứng oxy hóa–khử và chuyển hóa carbohydrate, lipid và protein.
- Niacin có nhiều trong thịt, các loại đậu và ngũ cốc. Tuy nhiên, niacin từ nguồn thực vật thường ở dạng liên kết nên khả năng hấp thu thấp hơn so với nguồn động vật.
- Nhiều loài động vật có thể tổng hợp niacin từ tryptophan, do đó nhu cầu niacin chịu ảnh hưởng bởi hàm lượng tryptophan trong khẩu phần.
Chó có khả năng chuyển hóa tryptophan thành niacin, trong khi mèo không thể tổng hợp niacin hiệu quả do tryptophan được ưu tiên chuyển sang con đường tạo acetyl-CoA. Vì vậy, mèo phải được cung cấp toàn bộ nhu cầu niacin từ thức ăn
Pyridoxine (B6)
- Vitamin B6 gồm ba dạng: pyridoxine, pyridoxal và pyridoxamine, trong đó pyridoxal 5′-phosphate (PLP) là dạng coenzyme có hoạt tính sinh học.
- PLP tham gia chủ yếu vào chuyển hóa acid amin (phản ứng chuyển amin, khử amin và khử carboxyl), đồng thời hỗ trợ chuyển hóa glucose, acid béo, tổng hợp hemoglobin và chuyển tryptophan thành niacin.
- Nhu cầu vitamin B6 tăng theo hàm lượng protein trong khẩu phần, do vai trò trung tâm của vitamin này trong chuyển hóa protein.
- Phân bố rộng trong thực phẩm; gan và cá chủ yếu chứa pyridoxal và pyridoxamine, trong khi mầm lúa mì và ngũ cốc nguyên hạt là nguồn pyridoxine và pyridoxamine.
- Thiếu vitamin B6 tự nhiên ở chó và mèo rất hiếm gặp.
Pantothenic Acid (B5)
- Hiện diện trong hầu hết các mô sống và sau khi hấp thu sẽ được chuyển thành coenzyme A (CoA).
- Coenzyme A đóng vai trò thiết yếu trong các phản ứng acetyl hóa, tham gia chuyển hóa carbohydrate, lipid và protein, đặc biệt trong chu trình acid citric (chu trình Krebs).
- Vitamin B5 có mặt trong gần như mọi loại thực phẩm, với nguồn dồi dào gồm gan, thận, lòng đỏ trứng, sữa và các loại đậu. Vì phân bố rất rộng nên thiếu vitamin B5 ở chó và mèo rất hiếm gặp.
Biotin (B7)
- Là coenzyme cần thiết cho các phản ứng carboxyl hóa, tham gia tổng hợp acid béo, acid amin không thiết yếu và purine.
- Biotin có trong nhiều loại thực phẩm, đặc biệt là gan, sữa, các loại đậu, hạt và lòng đỏ trứng. Tuy nhiên, avidin trong lòng trắng trứng sống gắn với biotin và cản trở hấp thu; nấu chín sẽ phá hủy avidin.
- Vi khuẩn đường ruột cũng tổng hợp biotin và có thể đáp ứng phần lớn, thậm chí toàn bộ, nhu cầu của chó và mèo. Vì vậy, thiếu biotin rất hiếm, nhưng việc sử dụng kháng sinh kéo dài làm giảm hệ vi khuẩn đường ruột có thể làm tăng nhu cầu biotin từ khẩu phần.
Acid folic (B9)
-
Đóng vai trò là chất chuyển nhóm methyl, vận chuyển các đơn vị carbon đơn lẻ trong nhiều phản ứng chuyển hóa. Đặc biệt, nó tham gia vào quá trình tổng hợp thymidine, một thành phần cấu tạo nên DNA.
-
Thiếu axit folic khiến cơ thể không thể sản xuất đủ DNA, dẫn đến giảm sự tăng trưởng và trưởng thành của tế bào. Biểu hiện lâm sàng ở thú là thiếu máu (anemia) và giảm bạch cầu (leukopenia).
-
Giống như một số vitamin nhóm B khác, axit folic được tổng hợp bởi vi khuẩn trong đại tràng (ruột già) của chó và mèo. Phần lớn, hoặc thậm chí là toàn bộ nhu cầu hàng ngày của chúng, có thể được đáp ứng từ nguồn tự tổng hợp này.
Cobalamin (B12)
-
Tham gia vận chuyển các đơn vị carbon đơn lẻ (giống axit folic), chuyển hóa chất béo và carbohydrate, đồng thời cần thiết cho quá trình tổng hợp myelin (vỏ bọc tế bào thần kinh).
-
Thiếu hụt dẫn đến tình trạng thiếu máu và suy giảm chức năng thần kinh. Tuy nhiên, tình trạng thiếu hụt cực kỳ hiếm gặp do cơ thể cần rất ít và có khả năng lưu trữ tốt.
-
Việc hấp thụ từ chế độ ăn cần có sự trợ giúp của nhóm glycoprotein gọi là yếu tố nội tại (intrinsic factors). Ở chó và mèo, yếu tố này được sản xuất chủ yếu bởi tuyến tụy và một phần nhỏ bởi niêm mạc dạ dày. Thiếu yếu tố này sẽ dẫn đến thiếu B12.
-
Chỉ được tìm thấy trong các thực phẩm có nguồn gốc động vật như thịt, gia cầm, cá và các sản phẩm từ sữa.
Là vitamin duy nhất chứa khoáng vi lượng (cobalt), được tổng hợp bởi vi sinh vật và có thể tích trữ nếu lượng dư thừa
Choline
- Đóng vai trò là chất cung cấp nhóm methyl cho các phản ứng chuyển hóa.
- Là tiền chất để tạo ra chất dẫn truyền thần kinh acetylcholine.
- Cần thiết cho việc vận chuyển axit béo bình thường trong tế bào
- Cấu tạo nên hai phospholipid quan trọng: phosphatidylcholine (lecithin) thiết yếu cho cấu trúc màng tế bào, và sphingomyelin có nồng độ cao trong các mô thần kinh.
- Cơ thể có thể tự tổng hợp choline từ axit amin serine. Quá trình này cần có sự tham gia của methionine (chất cho nhóm methyl), axit folic (folacin) và vitamin B12.
-
Vì cả choline và methionine đều là chất cho nhóm methyl, nên chế độ ăn giàu methionine có thể thay thế một phần nhu cầu choline của động vật.
-
Chưa có báo cáo nào về tình trạng thiếu hụt choline tự nhiên trong chế độ ăn của chó và mèo. Điều này là nhờ cơ thể chúng tự tổng hợp được, sự phổ biến của choline trong thức ăn, và khả năng bù trừ từ methionine.
Choline tham gia chuyển hóa và là thành phần không thể thiếu của màng tế bào
Vitamin C (acid ascorbic)
Việc sử dụng lượng lớn vitamin C bổ sung trong khẩu phần ăn của chó và mèo khỏe mạnh không được khuyến cáo và thậm chí có thể chống chỉ định.
Bài viết liên quan