Nội dung
Chuyên môn
Khả năng tiêu hóa tinh bột ở chó và mèo

Nguyễn Duyên
Nội dung được cung cấp bởi các bác sĩ chuyên khoa- Tinh bột trong khẩu phần chó mèo là chủ đề gây tranh cãi kéo dài, đặc biệt trong bối cảnh xu hướng “grain-free” và quan niệm rằng động vật ăn thịt không thể tiêu hóa carbohydrate. Tuy nhiên, bằng chứng sinh lý học, tiến hóa học và dinh dưỡng học hiện đại cho thấy bức tranh phức tạp hơn.
- Ở chó, quá trình thuần hóa đã thúc đẩy sự thích nghi di truyền với khẩu phần giàu tinh bột thông qua tăng số bản sao gen AMY2B và tăng hoạt tính enzyme tiêu hóa carbohydrate (Axelsson et al., 2013). Điều này cho phép chó tiêu hóa tinh bột hiệu quả, với tỷ lệ tiêu hóa thường >90% khi tinh bột được xử lý nhiệt thích hợp (Carciofi et al., 2008).
- Ngược lại, mèo là động vật ăn thịt bắt buộc, có hoạt tính enzyme tiêu hóa carbohydrate thấp hơn và thiếu glucokinase ở gan. Tuy nhiên, mèo vẫn có khả năng tiêu hóa tinh bột với mức tiêu hóa có thể đạt 70–95% (de-Oliveira et al., 2008).
- Các yếu tố quyết định khả năng tiêu hóa bao gồm nguồn tinh bột, mức độ gelatinization và công nghệ chế biến (extrusion).
- Tinh bột chưa xử lý nhiệt có khả năng tiêu hóa kém rõ rệt ở cả hai loài.
Tinh bột là gì?
- Là carbohydrate phức tạp có liên kết α-glycosidic và do đó được enzym tiêu hóa bởi α-amylase trong ruột non của động vật có vú
- Dễ tiêu hóa nhất được tạo ra trong quá trình quang hợp và đóng vai trò là nguồn dự trữ năng lượng trong thực vật
Carbohydrate là hợp chất hữu cơ gồm C, H, O, bao gồm:
- Monosaccharides (glucose)
- Disaccharides (maltose, sucrose)
- Oligosaccharides
- Polysaccharides (tinh bột, cellulose)
Phân loại
Nhóm đường đơn (Simple sugars)
- Monosaccharide (glucose, fructose và galactose) còn được gọi là carbohydrate hấp thụ được vì các hợp chất này không cần tiêu hóa bằng enzym và có thể được hấp thụ trực tiếp
- Disaccharide (lactose, sucrose, maltose và trehalose) dễ dàng được tiêu hóa bởi các enzym đường ruột ở hầu hết các động vật có vú
Nhóm Polysaccharides (Complex)
-
Starch (Tinh bột): Có nguồn gốc từ thực vật
-
Glycogen: Có nguồn gốc từ động vật
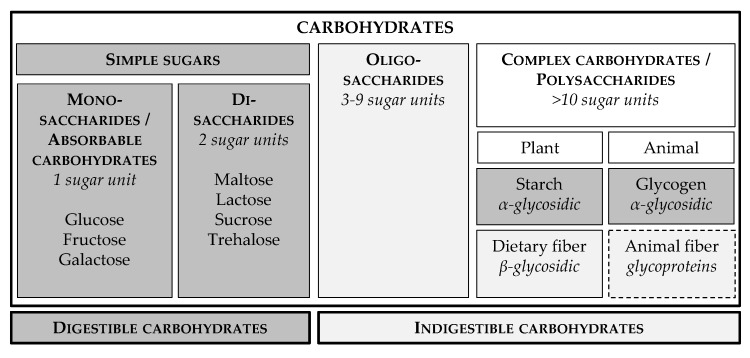
Bảng. Phân loại carbohydrate (Verbrugghe & Hesta, 2017)
Quá trình phân giải
Tinh bột (starch) là polysaccharide gồm hai thành phần chính: amylose và amylopectin. Quá trình tiêu hóa tinh bột bao gồm ba giai đoạn chính:
- Thủy phân tinh bột thành maltose và dextrin nhờ enzyme α-amylase.
- Chuyển maltose thành glucose nhờ các enzyme bờ bàn chải ruột non (maltase, isomaltase).
- Glucose được hấp thu qua biểu mô ruột nhờ các chất vận chuyển như SGLT1 và GLUT2, sau đó đi vào tuần hoàn để cung cấp năng lượng cho cơ thể
Khác với người, cả chó và mèo hầu như không có hoặc có rất ít amylase trong nước bọt. Do đó, sự tiêu hóa tinh bột chủ yếu bắt đầu tại ruột non dưới tác động của amylase tụy.
Từ sói đến chó nhà: quá trình thích nghi với khẩu phần chứa tinh bột
Thay đổi về sinh thái và lối sống
- Chó nhà (Canis familiaris) có nguồn gốc từ sói xám (Canis lupus), quá trình thuần hóa đã tạo ra những khác biệt đáng kể về sinh thái học và nhu cầu dinh dưỡng giữa hai loài. Sói là động vật săn mồi xã hội, phụ thuộc vào hoạt động truy đuổi và hạ gục con mồi cỡ lớn để đáp ứng nhu cầu năng lượng cao.
- Sự chuyển đổi từ lối sống săn bắt sang lối sống phụ thuộc vào nguồn thức ăn do con người tạo ra đã làm thay đổi đáng kể áp lực chọn lọc đối với hệ tiêu hóa và chuyển hóa năng lượng của chó (Axelsson et al., 2013; Bosch et al., 2015).
- Bên cạnh đó, chó nhà thường có mức độ vận động thấp hơn đáng kể so với sói hoang dã. Trong điều kiện tự nhiên, sói có thể di chuyển hàng chục kilomet mỗi ngày để săn mồi và bảo vệ lãnh thổ, trong khi phần lớn chó nhà có hoạt động thể chất hạn chế hơn. Sự khác biệt này góp phần làm giảm nhu cầu năng lượng duy trì (Maintenance Energy Requirement – MER) ở chó so với sói.
Khác biệt về nhu cầu năng lượng dinh dưỡng
Do phải duy trì hoạt động săn mồi cường độ cao, sói có nhu cầu năng lượng cao hơn đáng kể so với chó trưởng thành.
Royal Canin ước tính MER của sói trong tự nhiên có thể cao gấp 2–3 lần so với chó trưởng thành
- Sói (35 kg thể trọng) ~415 kcal/kg 0,75 thể trọng
- Chó (35 kg thể trọng) ~95-132 kcal/kg 0,75 thể trọng
Khác biệt về nhu cầu năng lượng dinh dưỡng
Khác biệt về nhu cầu năng lượng kéo theo sự khác biệt về chiến lược dinh dưỡng. Sói là loài ăn thịt điển hình với khẩu phần chủ yếu gồm mô động vật và chỉ tiêu thụ lượng thực vật rất nhỏ, thường thông qua đường tiêu hóa của con mồi hoặc nguồn thức ăn cơ hội. Ngược lại, chó nhà đã thích nghi với khẩu phần đa dạng hơn, bao gồm cả các nguồn carbohydrate từ ngũ cốc, củ và thực phẩm có nguồn gốc thực vật. Vì vậy, trong dinh dưỡng thú y hiện đại, chó thường được xem là động vật ăn tạp thay vì động vật ăn thịt.
Sự thích ứng di truyền
Sự thuần hóa chó kèm theo chọn lọc đột biến ở 3 gen chính liên quan đến tiêu hóa tinh bột và hấp thu glucose (AMY2B, MGAM, SGLT1) (Axelsson et al., 2013)
- A2MB: gen mã hóa enzyme α-amylase tụy. Trong khi sói thường chỉ mang khoảng hai bản sao AMY2B, chó nhà có thể mang từ 4 đến hơn 30 bản sao tùy giống. Sự gia tăng này làm tăng hoạt tính α-amylase tụy, từ đó nâng cao khả năng thủy phân tinh bột thành các sản phẩm có thể hấp thu.
- MGAM: Chịu trách nhiệm cho bước thứ hai trong quá trình phân giải tinh bột, xúc tác quá trình thủy phân maltose thành glucose.
- SGLT1: Tinh bột sau khi được tiêu hóa thành glucose sẽ được hấp thụ qua màng plasma của ruột non
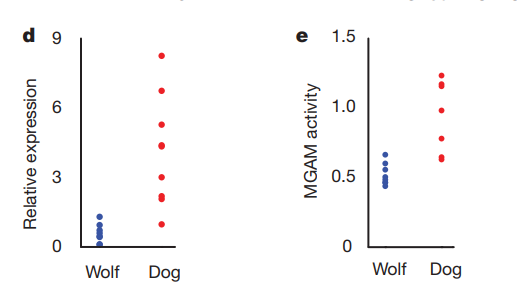
Hình. So sánh biểu hiện gen MGAM và hoạt tính enzyme tiêu hóa tinh bột giữa chó nhà và sói (Axelsson et al., 2013)
Sự thích nghi của hệ vi sinh vật đường ruột
Các nghiên cứu metagenomics cho thấy hệ vi sinh vật đường ruột của chó hiện đại có tỷ lệ vi khuẩn tham gia phân giải carbohydrate và lên men polysaccharide cao hơn so với sói (Coelho et al., 2018)
Coelho và cộng sự (2018) ghi nhận microbiome của chó giàu các gen liên quan đến chuyển hóa tinh bột, đường đơn và các polysaccharide có nguồn gốc thực vật. Điều này cho phép chó tận dụng hiệu quả hơn nguồn carbohydrate trong khẩu phần và sản xuất các acid béo chuỗi ngắn (SCFA) thông qua quá trình lên men ở ruột già. Các SCFA như acetate, propionate và butyrate không chỉ cung cấp năng lượng cho tế bào biểu mô ruột mà còn góp phần điều hòa miễn dịch và duy trì sức khỏe đường tiêu hóa.
Như vậy, sự thích nghi của chó với khẩu phần giàu tinh bột không chỉ diễn ra ở cấp độ di truyền mà còn được hỗ trợ bởi những thay đổi trong cấu trúc và chức năng của hệ vi sinh vật đường ruột. Đây được xem là một ví dụ điển hình của quá trình đồng tiến hóa giữa vật chủ, hệ vi sinh vật và môi trường dinh dưỡng trong quá trình thuần hóa.
Sự gia tăng gen AMY2B là bằng chứng di truyền cho thấy chó đã tiến hóa để sử dụng tinh bột hiệu quả
Tiêu hóa tinh bột ở mèo
Mèo là động vật ăn thịt bắt buộc (obligate carnivore), do đó quá trình tiến hóa không tạo ra áp lực chọn lọc mạnh để tối ưu hóa việc sử dụng carbohydrate như ở chó (Verbrugghe & Hesta, 2017)
Nghiên cứu của de-Oliveira và cộng sự (2008) cho thấy tỷ lệ tiêu hóa biểu kiến toàn phần (ATTD) của tinh bột trong nhiều khẩu phần thương mại dành cho mèo thường đạt trên 90%. Các nghiên cứu của Kienzle (1994) và Verbrugghe et al. (2017) cũng ghi nhận rằng tinh bột đã được hồ hóa hoàn toàn thông qua quá trình nấu hoặc ép đùn có thể được tiêu hóa gần như hoàn toàn trong ruột non của mèo trưởng thành khỏe mạnh.
Tuy nhiên, khả năng này phụ thuộc rất lớn vào mức độ xử lý nhiệt. Khi tinh bột chưa được hồ hóa đầy đủ, tỷ lệ tiêu hóa giảm đáng kể do hoạt tính α-amylase tụy tương đối thấp. Điều này giải thích tại sao công nghệ extrusion đóng vai trò đặc biệt quan trọng trong sản xuất thức ăn hạt cho mèo.
Hạn chế chuyển hóa carbohydrate ở mèo
Điểm khác biệt lớn nhất giữa mèo và chó không nằm ở khả năng tiêu hóa tinh bột mà nằm ở quá trình chuyển hóa glucose sau hấp thu. Trong quá trình tiến hóa, mèo đã phát triển để sử dụng protein và lipid làm nguồn năng lượng chính. Do đó, nhiều enzyme tham gia điều hòa chuyển hóa carbohydrate ở gan có hoạt tính thấp hoặc thiếu hoàn toàn.
Một ví dụ điển hình là glucokinase, enzyme chịu trách nhiệm phosphoryl hóa glucose tại gan sau bữa ăn. Hoạt tính glucokinase ở mèo rất thấp hoặc gần như không đáng kể so với động vật ăn tạp và chó (Ballard, 1965; Tanaka et al., 2005). Vì vậy, khả năng xử lý lượng lớn glucose sau bữa ăn của mèo kém linh hoạt hơn.
Bên cạnh đó, mèo duy trì hoạt động tân tạo đường (gluconeogenesis) ở mức cao gần như liên tục, ngay cả khi được cung cấp đầy đủ carbohydrate. Các enzyme tham gia gluconeogenesis như pyruvate carboxylase, fructose-1,6-bisphosphatase và phosphoenolpyruvate carboxykinase luôn được biểu hiện mạnh trong gan mèo (Morris, 2002). Điều này phản ánh sự thích nghi tiến hóa với khẩu phần giàu protein hơn là với carbohydrate.
Sự thích nghi của hệ vi sinh vật đường ruột
Mặc dù hệ vi sinh vật đường ruột của mèo nhìn chung có khả năng lên men carbohydrate thấp hơn chó, microbiome của mèo vẫn có thể sử dụng một phần tinh bột kháng (resistant starch) và chất xơ hòa tan để tạo ra các acid béo chuỗi ngắn như acetate, propionate và butyrate. Những chất chuyển hóa này góp phần duy trì sức khỏe biểu mô ruột, hỗ trợ miễn dịch niêm mạc và cải thiện môi trường vi sinh đường tiêu hóa (Sunvold et al., 1995).
Mèo có hoạt tính amylase thấp nhưng không đồng nghĩa với việc mèo không tiêu hóa được tinh bột.
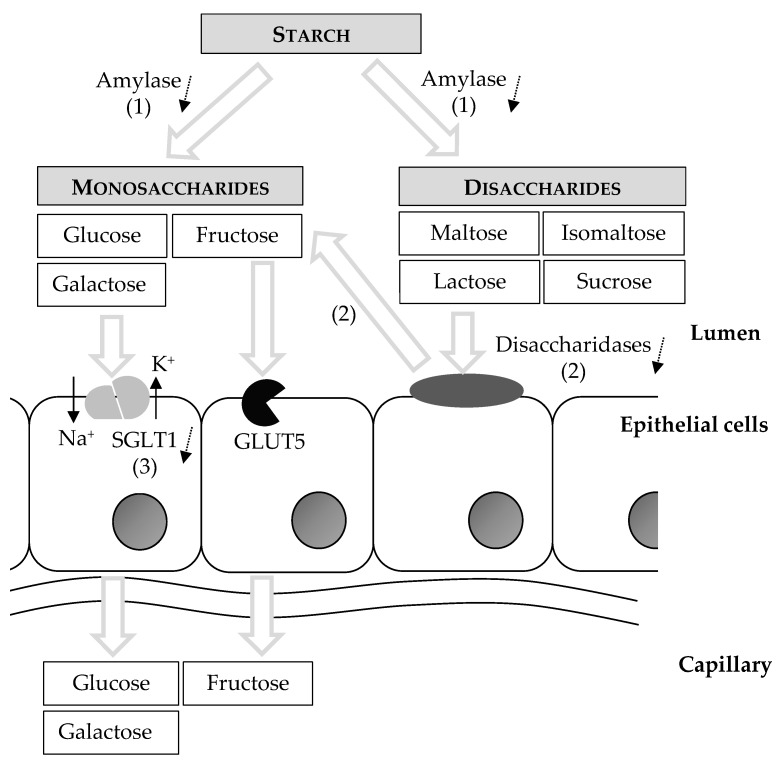
Hình. Quá trình tiêu hóa tinh bột ở mèo: amylase thấp → hoạt tính disaccharidase thấp → giảm tạo và hấp thu monosaccharide → hấp thu glucose qua SGLT1 nhưng chậm hơn khoảng 2 lần so với chó và khó tăng cường biểu hiện SGLT1 khi ăn khẩu phần giàu carbohydrate → khả năng sử dụng carbohydrate thấp hơn chó → (Verbrugghe & Hesta, 2017)
Yếu tố quan trọng nhất: Mức độ hồ hóa của tinh bột (starch gelatinization)
Khả năng tiêu hóa tinh bột ở chó và mèo không chỉ phụ thuộc vào đặc điểm sinh lý của từng loài mà còn chịu ảnh hưởng rất lớn từ quá trình chế biến thức ăn. Trong sản xuất thức ăn thú cưng hiện đại, đặc biệt là thức ăn khô dạng đùn ép (extruded pet food), tinh bột được xử lý dưới tác động đồng thời của nhiệt độ cao, áp suất và độ ẩm. Quá trình này làm phá vỡ cấu trúc tinh thể vốn bền vững của hạt tinh bột, khiến các hạt tinh bột trương nở và chuyển sang trạng thái dễ bị enzyme tiêu hóa tấn công hơn. Hiện tượng này được gọi là hồ hóa tinh bột (starch gelatinization).
Mức độ hồ hóa có ảnh hưởng trực tiếp đến khả năng tiêu hóa của tinh bột. Khi tinh bột được hồ hóa đầy đủ, enzyme α-amylase của tụy có thể tiếp cận và thủy phân các liên kết glycosidic hiệu quả hơn, từ đó làm tăng tỷ lệ tiêu hóa và hấp thu glucose tại ruột non. Nhiều nghiên cứu cho thấy tinh bột đã hồ hóa trong thức ăn đùn ép có thể đạt tỷ lệ tiêu hóa trên 90%, đặc biệt ở chó. Ngược lại, tinh bột sống hoặc chế biến chưa đầy đủ thường khó tiêu hóa hơn, làm gia tăng lượng tinh bột kháng tiêu hóa (resistant starch) đi xuống ruột già, nơi chúng được hệ vi sinh vật lên men tạo ra các acid béo chuỗi ngắn. Do đó, khi đánh giá giá trị dinh dưỡng của một nguồn carbohydrate trong thức ăn thú cưng, mức độ hồ hóa thường quan trọng hơn việc chỉ xem xét nguồn nguyên liệu ban đầu là ngô, gạo hay khoai tây.
Tinh bột có phải dưỡng chất thiết yếu?
Theo các khuyến cáo dinh dưỡng hiện nay của Hiệp hội Kiểm soát Thức ăn Hoa Kỳ (AAFCO) và Hội đồng Nghiên cứu Quốc gia Hoa Kỳ (NRC), không có nhu cầu tối thiểu bắt buộc đối với carbohydrate hay tinh bột trong khẩu phần của chó và mèo. Điều này xuất phát từ khả năng duy trì đường huyết thông qua quá trình tân tạo glucose (gluconeogenesis), trong đó cơ thể sử dụng các tiền chất như amino acid từ protein hoặc glycerol từ chất béo để tổng hợp glucose. Đặc biệt ở mèo, quá trình tân tạo glucose diễn ra liên tục và đóng vai trò quan trọng trong chuyển hóa năng lượng do loài này tiến hóa như một động vật ăn thịt bắt buộc.
Tuy nhiên, việc tinh bột không phải là dưỡng chất thiết yếu không đồng nghĩa với việc nó không có giá trị trong khẩu phần. Trên thực tế, carbohydrate là nguồn năng lượng hiệu quả và kinh tế, giúp giảm nhu cầu sử dụng protein cho mục đích tạo năng lượng, từ đó dành protein cho các chức năng sinh học quan trọng hơn như phát triển mô, miễn dịch và duy trì khối cơ. Ngoài ra, tinh bột còn đóng vai trò công nghệ quan trọng trong sản xuất thức ăn đùn ép, giúp tạo cấu trúc viên thức ăn ổn định và cải thiện độ ngon miệng. Một phần tinh bột kháng tiêu hóa còn có thể hoạt động tương tự chất xơ hòa tan, được hệ vi sinh vật đường ruột lên men tạo ra các acid béo chuỗi ngắn như butyrate, góp phần hỗ trợ sức khỏe niêm mạc ruột và cân bằng hệ vi sinh.
Cần xác định mức độ và loại carbohydrate phù hợp để tối ưu hóa sức khỏe và hiệu quả dinh dưỡng của khẩu phần
Kết luận
Từ các bằng chứng sinh lý học, dinh dưỡng học và di truyền học hiện nay, có thể khẳng định rằng cả chó và mèo đều có khả năng tiêu hóa và hấp thu tinh bột, trái với quan niệm phổ biến cho rằng động vật ăn thịt hoàn toàn không sử dụng được carbohydrate. Tuy nhiên, mức độ thích nghi giữa hai loài có sự khác biệt rõ rệt. Chó đã trải qua quá trình đồng tiến hóa với con người, dẫn đến sự gia tăng số lượng bản sao gene AMY2B và khả năng sử dụng tinh bột hiệu quả hơn tổ tiên là sói. Trong khi đó, mèo vẫn duy trì nhiều đặc điểm chuyển hóa của động vật ăn thịt bắt buộc, với hoạt tính enzyme tiêu hóa carbohydrate thấp hơn, nhưng vẫn có khả năng tiêu hóa tinh bột khi được chế biến phù hợp.
Bên cạnh đặc điểm sinh học của loài, mức độ chế biến và hồ hóa tinh bột là yếu tố quyết định khả năng tiêu hóa. Tinh bột được xử lý đúng cách thông qua quá trình đùn ép và hồ hóa sẽ có tỷ lệ tiêu hóa rất cao ở cả chó và mèo, trong khi tinh bột sống hoặc chế biến chưa đầy đủ sẽ làm giảm hiệu quả sử dụng dinh dưỡng.
Mặc dù tinh bột không phải là dưỡng chất thiết yếu do chó và mèo có thể tự tổng hợp glucose thông qua quá trình tân tạo đường, carbohydrate vẫn đóng vai trò quan trọng trong dinh dưỡng thú cưng hiện đại. Tinh bột cung cấp nguồn năng lượng hiệu quả, giúp tiết kiệm protein cho các chức năng sinh học khác, hỗ trợ công nghệ sản xuất thức ăn và có thể mang lại lợi ích cho sức khỏe đường ruột thông qua các dạng tinh bột kháng tiêu hóa.
Tài liệu tham khảo
- Axelsson, E., Ratnakumar, A., Arendt, M.-L., Maqbool, K., & Et., A. (2013). The genomic signature of dog domestication reveals adaptation to a starch-rich diet. Nature. https://doi.org/10.1038/nature11837
- Backus, R. C., Cave, N. J., & Keisler, D. H. (2007). Gonadectomy and high dietary fat but not high dietary carbohydrate induce gains in body weight and fat of domestic cats. British Journal of Nutrition, 98, 641–650.
- Ballard, F. J. (1965). Glucose utilization in mammalian liver. Comparative Biochemistry and Physiology, 14, 437–443.
- Coelho, L. P., Kultima, J. R., Costea, P. I., Fournier, C., Pan, Y., Czarnecki-Maulden, G., Hayward, M. R., Forslund, S. K., Schmidt, T. S. B., Descombes, P., Jackson, J. R., Li, Q., & Bork, P. (2018). Similarity of the dog and human gut microbiomes in gene content and response to diet. Microbiome, 6, 72. https://doi.org/10.1186/s40168-018-0450-3
- De-Oliveira, L. D., Carciofi, A. C., Oliveira, M. C. C., Vasconcellos, R. S., Bazolli, R. S., Pereira, G. T., & Prada, F. (2008). Effects of six carbohydrate sources on diet digestibility and postprandial glucose and insulin responses in cats. Journal of Animal Science, 86, 2237–2246.
- Kienzle, E. (1993). Carbohydrate metabolism of the cat. 1. Activity of amylase in the gastrointestinal tract of the cat. Journal of Animal Physiology and Animal Nutrition, 69, 92–101.
- Kienzle, E. (1994). Blood sugar levels and renal sugar excretion after intake of high carbohydrate diets in cats. Journal of Nutrition, 124(Suppl.), 2563S–2567S.
- Morris, J. G. (2002). Idiosyncratic nutrient requirements of cats appear to be diet-induced evolutionary adaptations. Nutrition Research Reviews, 15, 153–168.
- NRC. (2006). Nutrient Requirements of Dogs and Cats. National Academies Press.
- Sunvold, G. D., Hussein, H. S., Fahey, G. C., Merchen, N. R., & Reinhart, G. A. (1995). In vitro fermentation of selected fibrous substrates by dog and cat fecal inoculum. Journal of Animal Science, 73, 1099–1109.
- Verbrugghe, A., & Hesta, M. (2017). Cats and Carbohydrates: The Carnivore Fantasy? Veterinary Sciences, 4(4), 55. https://doi.org/10.3390/vetsci4040055
Bài viết liên quan